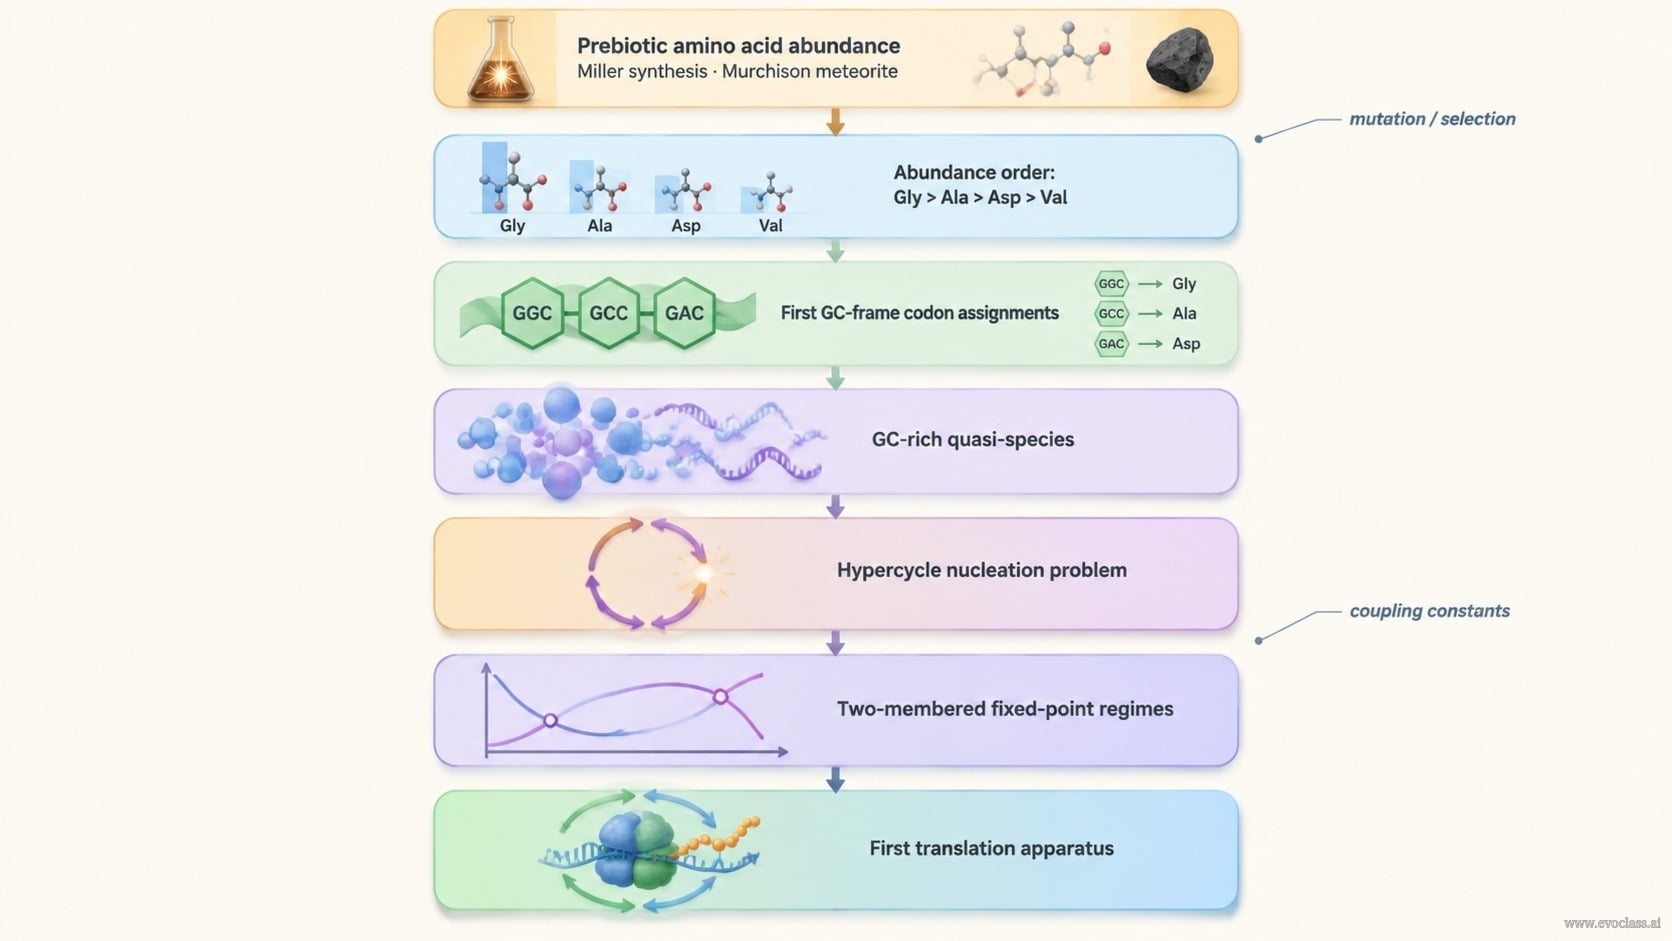
Asal-usul translasi biasanya dibayangkan sebagai perakitan ribosom yang tiba-tiba. Slide ini mengambil jalur berbeda: dimulai dari kelimpahan asam amino prebiotik dan menanyakan organisasi tingkat tinggi mana yang harus menjadi bagian dari aparatus translasi pertama.
Dari kimia prebiotik menuju alfabet pertama
Sintesis prebiotik tersimulasi (eksperimen tipe Miller) dan inventaris organik meteorit Murchison mengarah pada keluarga terbatas asam amino alifatik. Alih-alih campuran yang merata, hasil sintesis dan kelimpahan meteorit sangat condong: glisin mendominasi, diikuti alanin, asam aspartat, dan valin. Kecenderungan ini menjadi bahan mentah bagi alfabet genetik pertama.
Urutan kelimpahan dan kodon kerangka GC pertama
Urutan Gly > Ala > Asp > Val digunakan untuk mengurutkan penetapan kodon kerangka GC pertama. Kodon yang tersusun dari G dan C dipetakan terlebih dahulu ke asam amino paling sederhana dan paling melimpah, sehingga kelimpahan kimia dan pola pengkodean awal selaras. Dalam pembacaan ini, sistem pengkodean paling awal adalah sistem kaya GC, dan penetapannya merupakan konsekuensi ketersediaan, bukan kebetulan.
Masalah nukleasi hipercycle
Hipercycle berperilaku berbeda dari replikator autokatalitik tunggal. Satu replikator pada prinsipnya dapat dimulai dari satu salinan templat; jaringan siklik tidak dapat, karena penutupan lingkarannya memerlukan kehadiran semua anggotanya secara bersamaan. Karena itu, aparatus translasi pertama bukanlah penemuan molekuler yang terisolasi. Ia harus dirakit secara bertahap dari quasi-spesies kaya GC, dengan mutasi dan seleksi menambahkan serta menyempurnakan komponennya langkah demi langkah hingga siklusnya tertutup.
Titik tetap hipercycle dua anggota
Analisis titik tetap pada hipercycle dua anggota menunjukkan bahwa hasilnya bergantung pada konstanta kopling relatif yang menghubungkan antaranggota. Tiga rezim kualitatif muncul: kompetisi terbuka, ketika satu anggota mengalahkan anggota lainnya; seleksi salah satu anggota, bergantung pada kondisi awal; dan stabilisasi hipercycle timbal balik, ketika setiap anggota memperkuat anggota lainnya. Hanya rezim terakhir yang mendukung aparatus yang terkopel translasi, karena pada kasus inilah replikasi RNA dan sintesis peptida saling memperkuat alih-alih bersaing.
Translasi sebagai ambang, bukan penemuan
Gambaran yang muncul adalah bahwa aparatus translasi pertama merupakan ambang dalam sistem hipercycle yang menghubungkan replikasi RNA, sintesis peptida, dan penutupan katalitik. Pertanyaan pemandunya adalah XI. Bagaimana Memulai Translasi? Peta jalan di atas menjawabnya: titik awalnya adalah kelimpahan kimia, dan titik akhirnya adalah siklus yang saling memperkuat melalui mutasi, seleksi, dan kopling yang memadai.
Asam Amino Prebiotik dan Aparatus Translasi PertamaPeta jalan bertahap menghubungkan kelimpahan asam amino purba (sintesis tipe Miller dan data meteorit Murchison) dengan aparatus translasi pertama. Peta ini melewati urutan kelimpahan Gly > Ala > Asp > Val, penetapan kodon kerangka GC paling awal, quasi-spesies kaya GC, masalah nukleasi hipercycle, dan rezim titik tetap siklus dua anggota, lalu berakhir pada aparatus translasi yang disatukan oleh replikasi RNA, sintesis peptida, dan penutupan katalitik.